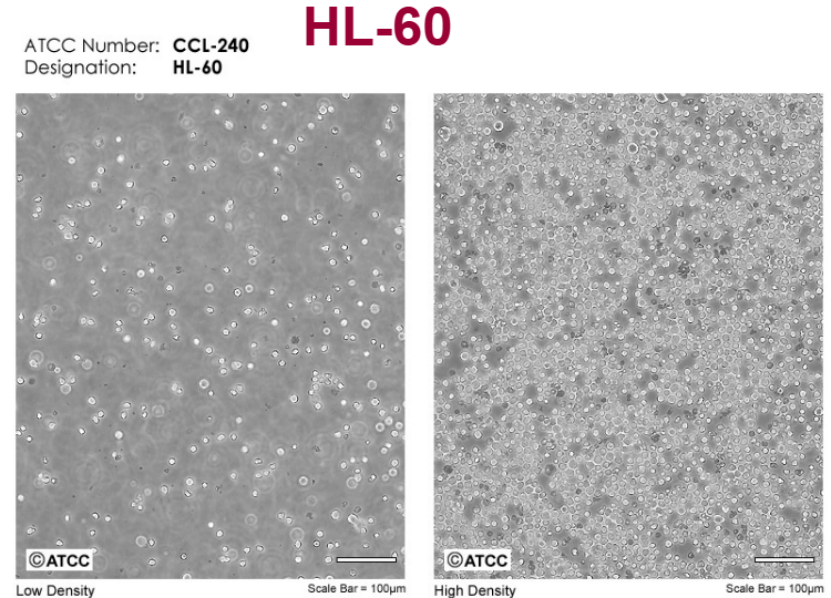
Die HL-60-Zelllinie ist eine humane primäre myeloische Leukämie-Zelllinie, die aus einer akuten myeloischen Leukämie (AML) abgeleitet wurde. Diese Zelllinie wurde ursprünglich von S.J. Collins und Mitarbeitern an einem 36-jährigen weiblichen Patienten mit akuter promyelocytischer Leukämie gewonnen und wird weit verbreitet zur Untersuchung der Differenzierung, Proliferation, Apoptose und Arzneimittelsensitivität myeloischer Zellen verwendet [9].
HL-60-Zellen besitzen die Fähigkeit zur Selbstdifferenzierung und können durch verschiedene chemische Induktoren wie Dimethylsulfoxid (DMSO), all-trans Retinsäure (ATRA), 1,25-Dihydroxyvitamin D3 usw. zur Differenzierung in reife Granulozyten, Monozyten und Makrophagen induziert werden [5,6,10]. Diese Induktoren fördern die Differenzierung von HL-60-Zellen durch Aktivierung spezifischer Signalwege, wie z.B. des retinoischen Rezeptor-vermittelten Signalwegs (RAR) [7,12].
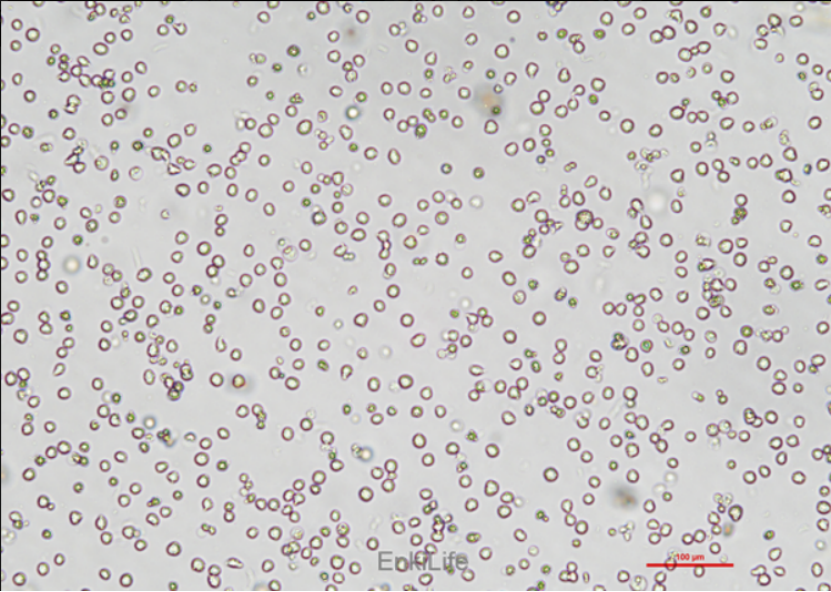
HL-60-Zellen zeigen während des Kultivierungsprozesses eine hohe Heterogenität, wobei sich einige Zellen in makrophagenartige oder eosinophilenartige Phänotypen differenzieren [9]. Darüber hinaus zeigen HL-60-Zellen Eigenschaften wie Phagozytoseaktivität, Chemotaxis, Superoxidproduktion und NBT-Färbeassay, was sie zu einem idealen Modell für die Erforschung der Funktion myeloischer Zellen macht [6].
In der Arzneimittelforschung werden HL-60-Zellen weit verbreitet verwendet, um die Aktivität von Antikrebsmitteln zu bewerten. Zum Beispiel haben α -Tomatin gezeigt, dass es das Wachstum von HL-60-Zellen hemmt und ihre Apoptose induziert, unter Beteiligung der Aktivierung des NF-κ B und seiner Auswirkungen auf Apoptose-assoziierte Proteine wie Bcl-2 und Survivin [2]. Darüber hinaus haben einige Studien auch die zytotoxischen Effekte anderer Verbindungen wie Lp16-PSP an HL-60-Zellen untersucht und festgestellt, dass es den Zelltod durch den apoptotischen Weg induziert [8].
Die HL-60-Zelllinie ist aufgrund ihrer breiten Anwendung und Multifunktionalität in der Leukämieforschung zu einem wichtigen Werkzeug für das Verständnis der Pathogenese, des Arzneimittelscreenings und der Neuentwicklung von Arzneimitteln gegen myeloische Leukämien geworden.
Die HL-60-Zelllinie ist ein weit verbreitetes Modell zur Erforschung des Differenzierungsprogramms der humanen Leukämie, und ihr Differenzierungsmechanismus umfasst mehrere Signalwege und molekulare Mechanismen. Insbesondere spielt die retinoische Rezeptor-vermittelte Signalisierung (RA) eine entscheidende Rolle bei der Differenzierung von HL-60-Zellen.
Retinsäure fördert die Differenzierung von HL-60-Zellen durch Signalwege, die über ihre Rezeptore vermittelt werden (RARα, RXR α und RXR γ). Spezifisch aktiviert RA nach Bindung an RAR α下游 Transkriptionsfaktoren wie den nukleären Faktor kappa B (NF κ B) und den Transkriptionsfaktor ERK, wodurch die Genexpression reguliert wird [17,19,20]. Die Aktivierung dieser Transkriptionsfaktoren fördert die Expression von Schlüsselenen, die an Zellzyklusarrest und Differenzierung beteiligt sind, wie BLR1 und CXCR5 [19,22].
RA-induzierte Signalisierung umfasst auch den MAPK-Signalweg, insbesondere die Aktivierung von ERK. Die Aktivierung von ERK verstärkt nicht nur die Zelldifferenzierung, sondern erhöht auch die RA-induzierte Signalisierung durch einen positiven Rückkopplungsmechanismus [19,20]. Darüber hinaus kann RA das Tumorwachstum und die Angiogenese auch hemmen, indem es Rb-RAF-Interaktionen unterdrückt [17].
Darüber hinaus umfasst der durch RA induzierte Differenzierungsprozess auch andere wichtige Signalstoffe und -wege. Zum Beispiel kann RA die nukleäre Akkumulation von Raf1 fördern und die Signalkompetenz entlang der c-Raf/GSK-3/VDR-Achse verbessern [17]. Darüber hinaus kann RA den Zelltod verhindern, indem es die c-Raf/MEK/ERK-Signalweg unterdrückt [17].
Zusammenfassend fördert Retinsäure die Differenzierung von HL-60-Zellen durch ihren Rezeptor-vermittelten Signalweg, insbesondere durch Aktivierung von Transkriptionsfaktoren wie NF κ B und ERK sowie Regulation des MAPK-Signalwegs.
Wie wird die Heterogenität, die HL-60-Zellen während des Kultivierungsprozesses zeigen, erzeugt, und wie wirkt sich diese Heterogenität auf die Forschung aus?
Laut den Suchergebnissen liegt der Schwerpunkt auf den Kultivierungsbedingungen, dem Differenzierungsprozess und einigen experimentellen Ergebnissen von HL-60-Zellen, aber es gibt keine detaillierte Erklärung des Mechanismus der Zellheterogenität und ihrer spezifischen Auswirkung auf die Forschung.
Dennoch können einige mögliche Gründe und Auswirkungen aus einigen Beweisen abgeleitet werden:
1. Unterschiede in den Kultivierungsbedingungen: HL-60-Zellen zeigen unterschiedliche Wachstumscharakteristiken unter verschiedenen Kultivierungsbedingungen. Zum Beispiel können Unterschiede im Kulturmedium, pH-Wert, Temperatur und Kohlendioxidkonzentration zu zellulärer Heterogenität führen [24]. Diese Änderungen der Bedingungen können den physiologischen Zustand und das Verhalten von Zellen beeinflussen, was zu Heterogenität führt.
2. Veränderungen während der Differenzierung: HL-60-Zellen können durch Zugabe verschiedener Stimuli (wie ATRA, DMSO usw.) differenzieren, und die Genexpression sowie der Phänotyp der Zellen ändern sich während der Differenzierung [23,25,26]. Die Veränderungen während dieses Differenzierungsprozesses können ebenfalls zu zellulärer Heterogenität führen.
3. Unterschiede in den experimentellen Verfahren: Verschiedene experimentelle Verfahren (wie Waschen, Zentrifugation, Färben usw.) können ebenfalls die zelluläre Heterogenität beeinflussen [23]. Zum Beispiel können verschiedene Waschschritte zu Unterschieden in Oberflächenmarkern der Zellen führen, wodurch die zellulare Heterogenität beeinflusst wird.
4. Spontane Differenzierung von Zellen: HL-60-Zellen besitzen die Eigenschaft der spontanen Differenzierung, und selbst ohne externe Stimulation können sich Zellen spontan in verschiedene Subtypen differenzieren [15]. Diese spontane Differenzierung ist auch ein möglicher Grund für Heterogenität.
5. Auswirkung auf die Forschung: Die Heterogenität von Zellen kann die Interpretation und Anwendung der experimenteller Ergebnisse beeinflussen. Zum Beispiel kann bei Verwendung von HL-60-Zellen als Modell für die Forschung die Heterogenität zu inkonsistenten experimentellen Ergebnissen führen, was die Zuverlässigkeit und Reproduzierbarkeit des Studien [26].
Zusammenfassend kann zwar die gesuchte Information die Frage nicht direkt beantworten, aber es kann abgeleitet werden, dass die Heterogenität von HL-60-Zellen durch verschiedene Faktoren verursacht sein könnte, einschließlich Kultivierungsbedingungen, Differenzierungsprozessen, experimenteller Verfahren und spontaner Differenzierung von Zellen.
Was ist der spezifische Mechanismus des α -Tomatins bei der Hemmung des Wachstums und der Induktion von Apoptose in HL-60-Zellen?
Die spezifischen Mechanismen, durch die α -Tomatin das Wachstum von HL-60-Zellen hemmt und ihre Apoptose induziert, umfassen mehrere Aspekte, einschließlich Wechselwirkungen mit cholesterinassoziierten Zellmembranen, Veränderungen im mitochondrialen Membranpotential und Aktivierung des NF-κ B-Signalwegs.
Alpha-Tomatenalkaloide hemmen das Wachstum von HL-60-Zellen signifikant und induzieren Apoptose durch Wechselwirkung mit Cholesterin in der Zellmembran. Forschungsergebnisse zeigen, dass die Apoptose und Wachstums Hemmung von HL-60-Zellen, die mit α -Tomatenalkaloiden behandelt wurden, teilweise durch den Cholesterin-Scavenger 12-O-deacetyl-13-cholesterolid blockiert werden, was darauf hinweist, dass die Wechselwirkung zwischen α -Tomatenalkaloiden und cholesterinassoziierten Zellmembranen eine wichtige Rolle bei der Regulation ihrer Effekte spielt [2].
Darüber hinaus induzieren α -Lycopene die Zellapoptose durch Beeinflussung des mitochondrialen Membranpotentials. Forschungsergebnisse zeigen, dass in Anwesenheit von Alpha-Tomatenalkaloiden das mitochondriale Membranpotential der HL-60- und K562-Zelllinien von einer grünen Kurve zu einer blauen Kurve wechselt, was einen Verlust des mitochondrialen Membranpotentials anzeigt [27]. Diese Änderung der mitochondrialen Funktion unterstützt weiter die Möglichkeit, dass Alpha-Tomatenalkaloide den Zelltod durch den mitochondrialen Weg induzieren.
Alpha-Tomatenalkaloide können ihre Effekte auch durch Aktivierung des NF-κ B-Signalwegs ausüben. Forschungsergebnisse zeigen, dass Alpha-Tomatenalkaloide NF-κ B aktivieren können, wodurch sie die Zellapoptose fördern [2]. Dieser Mechanismus kann mit der Regulation des Zellmembrancholesterins durch Alpha-Tomatenalkaloide zusammenhängen, da Cholesterinregulation die Aktivierung von NF-κ B beeinflussen kann [2].
Obwohl die Induktion der Apoptose in HL-60-Zellen durch α -Tomatenalkaloide nicht mit Caspase-Aktivierung zusammenhängt, ist ihre Induktion der Apoptose in anderen Arten von Leukämie-Zellen wie MCF-7 und K562 mit Caspase-Aktivierung verbunden [27,28]. Dies deutet darauf hin, dass der Wirkmechanismus von α -Tomatenalkaloiden bei verschiedenen Zelltypen unterschiedlich sein kann.
Alpha-Tomatenalkaloide hemmen das Wachstum von HL-60-Zellen signifikant und induzieren Apoptose durch verschiedene Mechanismen wie Wechselwirkung mit cholesterinassoziierten Zellmembranen, Beeinflussung des mitochondrialen Membranpotentials und Aktivierung des NF-κ B-Signalwegs.
Was ist der spezifische Mechanismus des zytotoxischen Effekts von Lp16-PSP auf HL-60-Zellen und seiner Induktion des Apoptosewegs?
Der spezifische Mechanismus des zytotoxischen Effekts von Lp16-PSP auf HL-60-Zellen und seiner Induktion des Apoptosewegs ist wie folgt:
1. Zytotoxische Effekte:
Lp16 PSP zeigt signifikante Zytotoxizität in HL-60-Zellen. Forschungsergebnisse zeigen, dass Lp16 PSP signifikante Veränderungen der Morphologie und des Volumens von HL-60-Zellen verursachen kann, einschließlich einer Abnahme des Zellvolumens und Blutungs, was darauf hinweist, dass sich die Zellen in Apoptose oder Todprozessen befinden [8].
2. Mechanismen der Apoptose-Induktion:
Lp16 PSP induziert Apoptose in HL-60-Zellen durch verschiedene Wege:
DNA-Fragmentierung: Nach Behandlung mit Lp16 PSP unterliegt die DNA von HL-60-Zellen einer Fragmentierung, was ein wichtiges Merkmal der Apoptose ist [8].
Verlust des mitochondrialen Membranpotentials: Lp16 PSP führt zu einem Verlust des mitochondrialen Membranpotentials, was das Ergebnis der kombinierten Wirkung von exogenen und endogenen Apoptosewegen ist [8].
Caspase-Aktivierung: Lp16 PSP aktiviert Caspase-8 und Caspase-9, was weiter die Aktivierung von Caspase-3 fördert, was ein wichtiger Schritt in der Zellapoptose ist [8].
Zellzyklusarrest: Lp16 PSP vermittelt G1-Phase-Zellzyklus-Arrest durch p21WAF1/CIP1, wodurch die Zellproliferation gehemmt und Apoptose gefördert wird [8].
Hemmung von NF-κ B: Lp16 PSP hemmt die Translokation von NF-κ B in den Kern durch Reduktion des Spiegels von phosphoryliertem I κ B α, wodurch die Expression von Genen reduziert wird, die mit Apoptose und Proliferation zusammenhängen, wie Bcl-2 und Cyclin D1 [8].
3. Veränderungen der Genexpression:
Nach Behandlung mit Lp16 PSP wurden signifikante Veränderungen in der Expression von Genen, die mit Apoptose und Zellzyklus zusammenhängen, beobachtet. Spezifisch zeigt es sich als Hochregulierung von Bax, Caspase-3, Caspase-8, Caspase-9, FasL, p21, p27 und Bcl-2, während eine Herabregulierung von Bcl-2, cdk4, cdk6, cdk2, Cyclin D1 und E [8].
Was sind die neuesten Entwicklungen in der Anwendung der HL-60-Zelllinie bei der Arzneimittelentwicklung?
Die Anwendung der HL-60-Zelllinie in der Neuentwicklung von Arzneimitteln konzentriert sich hauptsächlich auf folgende Aspekte:
1. Arzneimittelscreening und Bewertung biologischer Aktivität:
Die HL-60-Zelllinie wird weit verbreitet für das Arzneimittelscreening und die biologische Aktivitätsbewertung verwendet. Zum Beispiel haben Forscher die biologische Aktivität des neuen Antikrebsmittels iPAdo an der HL-60-Zelllinie getestet [5]. Darüber hinaus wurde die HL-60-Zelllinie auch verwendet, um die Effekte von neuartigen Oxaphosphorin-Arzneimitteln (wie D-18864, D-17272 und D-19575) auf das Überlebensrate der Zellen, Zellgröße und den Zellzyklus zu bewerten [33].
2. Immunologische Forschung:
Die HL-60-Zelllinie kann die Differenzierung reifer Granulozyten, Monozyten, Makrophagen und Eosinophilen induzieren und kann verwendet werden, um immunologische Prozesse wie Zellmigration und chemische Signalgebung zu studieren [5]. Darüber hinaus wurde die HL-60-Zelllinie verwendet, um Toll-like-Rezeptoren (TLRs) und Zytokinexpression zu untersuchen, wie z.B. die regulatorische Wirkung von Baicalin auf TLRs und Zytokinexpression [29].
3. Erforschung des Apoptose-Mechanismus:
Die HL-60-Zelllinie ist ein ideales Modell zur Untersuchung der Zellapoptose. Forschungsergebnisse zeigen, dass die HL-60-Zelllinie auf verschiedene apoptotische Stimuli reagiert und verwendet werden kann, um die positiven und negativen Regulationsmechanismen von exogenen oder physiologischen pharmakologischen Stimuli auf Apoptose zu studieren [16]. Darüber hinaus kann die HL-60-Zelllinie auch verwendet werden, um den Effekt von entzündlichen Agentien auf Apoptoseregulation zu untersuchen [16].
4. Genexpression und Differenzierungsforschung:
Die HL-60-Zelllinie hat bidirektionales Differenzierungspotenzial und kann in Monozyten oder Granulozyten induziert werden, was sie zu einem idealen Modell für die Erforschung der myeloischen Zelldifferenzierung macht [32]. Die HL-60-Zelllinie wurde auch verwendet, um die Heterogenität der antibakteriellen Aktivität, funktionelle Antwort und Genexpression zu untersuchen [30].
5. Weitere Anwendungen:
Die HL-60-Zelllinie kann auch verwendet werden, um die Kryokonservierung und Wiederherstellungsfunktionen von Granulozyten zu studieren [30], sowie zu untersuchen Zellproliferation, Differenzierung und Apoptose-Ereignisse [31].
Referenzen
1. Croton caudatus Geiseler induziert die Differenzierung der akuten myeloischen Leukämie-Zelllinien. Takhellambam Chanu Machathoibi et al.
2. α-Tomatine hemmt Wachstum und induziert Apoptose in HL-60 humanen myeloischen Leukämie-Zellen. HUARONG HUANG et al. [PMID: 25625536]
3. Nukleäre Proteomik der induzierten Leukämie-Zell-Differenzierung. Svetlana Novikova et al. [PMID: 36291090]
4. Antileukämische Aktivität von kombinierten epigenetischen Agenten, DNMT-Inhibitoren Zebularin und RG108 mit HDAC-Inhibitoren, gegen promyelocytische Leukämie HL-60-Zellen. [PMID: 22820861]
5. N6-Isopentenyl Adenosin,ein vielversprechendes Antikrebsmittel:Synthese neuer Analoga,
Bewertung der Antiproliferativen Aktivität und Einblick in den Wirkmechanismus. Università degli Studi di Milano et al.[2008-12-31]
6. Auswahl der richtigen Zelllinie für die akute myeloische Leukämie (AML)-Forschung. Rafał Skopek et al.[PMID: 36982453]
7. (Chalkogen)Semicarbazone und ihre Kobalt-Komplexe differenzieren HL-60 myeloische Leukämie-Zellen und sind zytotoxisch gegenüber Tumorzelllinien. [PMID: 30108695]
8. Lp16-PSP, ein Mitglied der YjgF/YER057c/UK114 Proteinfamilie induziert Apoptose und p21WAF1/CIP1 vermittelten G1-Zellzyklus-Arrest in humanen akuten promyelocytischen Leukämie (APL) HL-60-Zellen. Thomson Patrick Joseph et al.
9. HOXA9 als Risikofaktor in akuter myeloischer Leukämie. Chris Spearman.
10. Molekulare und epigenetische Veränderungen in normaler und maligner Myelozytose in humaner Leukämie 60 (HL60) promyelocytischer Zelllinienmodell. Somnath Paul et al. [PMID: 36819104]
11. Cyclooxygenase-2 (COX-2)-Hemmung begrenzt Indolamin 2,3-Dioxygenase 1 (IDO1) Aktivität in akuten myeloischen Leukämie-Zellen.[ PMID: 23973990]
12.Ein effektives Modell des retinoischen Rezeptor-induzierten HL-60 Differenzierungsprogramms. Ryan Tasseff et al. [PMID: 29085021]
13. Die Wirkung von Knochenmarkmesenchymalen Stromalzell-Exosomen auf die biologischen Funktionen der akuten myeloischen Leukämie: ein Fokus auf das potenzielle Rolle von LncRNAs. [PMID: 38777995]
14. Intrazelluläre Akkumulation und Sekretion von YKL-40 (CHI3L1) im Verlauf der DMSO-induzierten HL-60 Zell-Differenzierung. [PMID: 38675403]
15. Human akute promyelocytische Leukämie Zell HL-60 Spezifikation. Chinesische Akademie der Wissenschaften Komitee für die Erhaltung von typischen Kulturen.
16. In-vitro-Detektion von apoptotischen Stimuli durch Verwendung der HL-60 myeloischen leukämischen Zelllinie.[PMID: 8548540]
17. Roscovitine verstärkt all- trans Retinsäure (ATRA)-induzierte nukleäre Anreicherung eines Ensembles aktivierter Signalstoffe und erhöht ATRA-induzierte myeloische Zell-Differenzierung.[PMID: 32256976]
18. Retinoischer Rezeptor-Regulation der Entscheidungsfindung für Zell-Differenzierung. Mustapha Najimi et al. [PMID: 37082619]
19. Nukleärer Raf-1-Kinase reguliert den CXCR5-Promotor durch Assoziation mit NFATc3, um retinoischer Rezeptor-induzierte leukämische Zell-Differenzierung anzutreiben. [PMID: 24330068]
20. Ein effektives Modell des retinoischen Rezeptor-induzierten HL-60 Differenzierungsprogramms. [PMID: 29085021]
21. Human myeloische blastische Leukämie-Zellen (HL-60) exprimieren einen Membranrezeptor für Östrogen, der signalisiert und retinoischer Rezeptor-induzierte Zell-Differenzierung moduliert. [PMID: 18692045]
22. Modellierung und Analyse der retinoischen Rezeptor-induzierten Differenzierung von uncommitted Vorläuferzellen. [PMID: 21437295]
23. Neutrophil extrazelluläre Fallen-vermittelte Beclin-1 Unterdrückung verschlimmert Atherosklerose durch Hemmung der Makrophagen Autophagie. [PMID: 35923856]
24.Modell regulatorische Netzwerke für Proteine, die aktiviert und gehemmt werden im Prozess der induzierten Granulozyten-Differenzierung. S.E. Novikova et al.
25. Kombinierte Wirkung von natürlich abgeleiteten Biofilm-Inhibitoren und differenzierten HL-60 Zellen in der Prävention von Staphylococcus aureus Biofilmbildung. [PMID: 33182261]
26. Transkriptomische Analyse von Lipoteichoic acid‑behandelt undifferenzierte und neutrophil‑like differenzierte HL‑60 Zellen. [PMID: 38476893]
27. α-Tomatine-vermittelte Antikrebs-Aktivität in vitro und in vivo durch Zellzyklus- und Caspase-unabhängige Wege. [PMID: 22970166]
28. Der zytotoxische Effekt von α-Tomatine in MCF-7 humanen Adeno-Karzinom Brustkrebs-Zellen hängt von seiner Wechselwirkung mit Cholesterin im Inkubationsmedium ab und involviert keine Apoptose-Induktion. [PMID: 24100733]
29. Andrographolid moduliert einige toll-like Rezeptoren und Zytokin-Expressionen in HL-60 Zelllinie. Ajit Kumar Thakur et al.Pharm Pharmacol Int J. 2015;2(4):116‒120.
30. Was ist der evolutionäre Fingerabdruck in Neutrophil Granulozyten?. Leonie Fingerhut et al.[PMID: 32630520]
31. Einbeziehung des intrinsischen mitochondrialen Wegs in neosergeolide-induzierte Apoptose von humanen HL-60 Leukämie-Zellen: die Rolle der mitochondrialen Permeabilitätsübergangspore und DNA-Schäden. [PMID: 22775415]
32. Effekte von Extraktionen aus regenerierenden Organismen auf Differenzierung der humanen myeloischen Leukämie HL-60 Zelle Linie.
33.
In vitro Effekte neuer Generation Oxazaphosphorine auf humanen promyelocytischen Leukämie-Zellen. [PMID: 23767290]